细胞通讯信号有多大"水分"?试试SigXTalk
Hello大家好~今天跟大家分享一个新的细胞通讯分析方法:SigXTalk。这项工作2025年发表在了Nature Communications上。
跟大家常用的CellChat和CellPhoneDB等工具不同,SigXTalk尝试解决一个长期被忽略的大问题:细胞通讯里复杂的"串线"现象。
我们为什么需要新工具?
做单细胞分析的朋友肯定都熟悉CellChat、NicheNet这些经典工具。它们能很好地帮我们推断哪些细胞之间存在配体-受体对的互作,也能预测下游可能受调控的靶基因。
但是,这类分析通常有一个默认的隐含假设:它们认为每一条信号通路都是独立运作的,互不干扰。
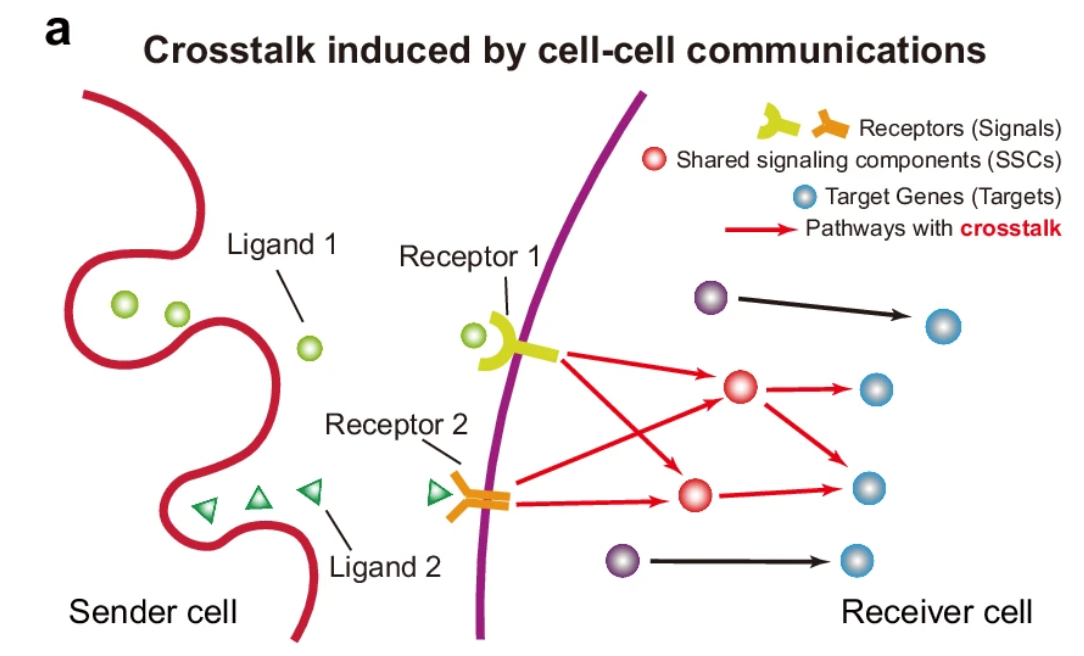
然而回到生物学现实中,细胞内的信号网络是非常复杂的,不同通路之间存在大量的"串扰"(Crosstalk)。比如:
- 两条不同的通路可能会共用同一个转录因子作为中间人。
- 来自不同源头的通讯信号,最后可能激活了同一个靶基因。
- 有时候一个信号甚至会通过共享的组件,"意外"激活了本不该由它调控的基因。
换句话说,当我们现在的分析结果显示"信号A驱动了基因X的表达"时,我们其实很难确定:这真的是A独家调控的吗?会不会是隔壁B通路的信号"泄漏"过来掺了一脚?
这就是SigXTalk想要解决的核心痛点:它想搞清楚这些复杂的交叉关系,看看每条通路到底有多"专一"。
两个衡量"专一"程度的新指标
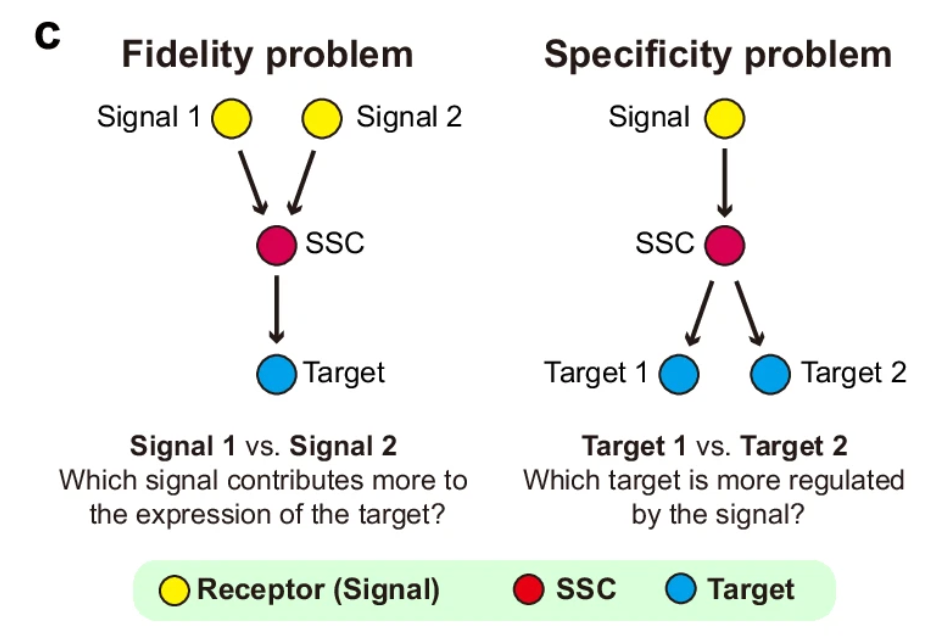
为了系统地回答这个问题,SigXTalk引入了两个核心概念来量化信号的选择性:
保真度(Fidelity): 这是从靶基因的角度看。它衡量的是一条通路的靶基因,在多大比例上是被"正确"的上游信号驱动的。保真度高,说明这个靶基因很专一,很少被其他不相干的信号误触发。
特异性(Specificity): 这是从信号源的角度看。它衡量的是一个通讯信号,在多大比例上专门驱动自己通路内的靶基因。特异性高,说明这个信号不乱跑,不会去激活无关的靶点。
有了这两个维度,我们第一次能给每条通路打个分,看看它到底有多靠谱。
SigXTalk是怎么工作的?
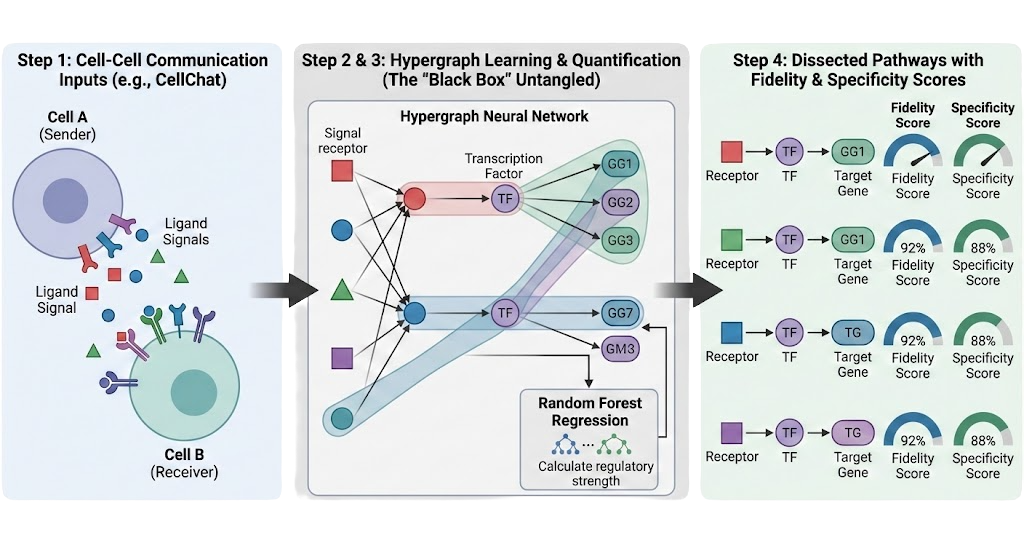
这个方法大概分为四步,输入数据主要是单细胞测序数据和细胞类型注释。
第一步:先找出通讯信号
SigXTalk会先运行CellChat,识别出在发送细胞和接收细胞之间哪些配体-受体对是活跃的。这些被激活的受体,就成了后续分析的信号输入源。
第二步:用"超图"神经网络来理清关系
这是整个方法最创新的地方。在普通的网络图中,一条边只能连接两个点(比如A调控B)。但现实生物学中,一个转录因子往往能同时调控多个靶基因,这种高阶关系用普通图很难准确表示。
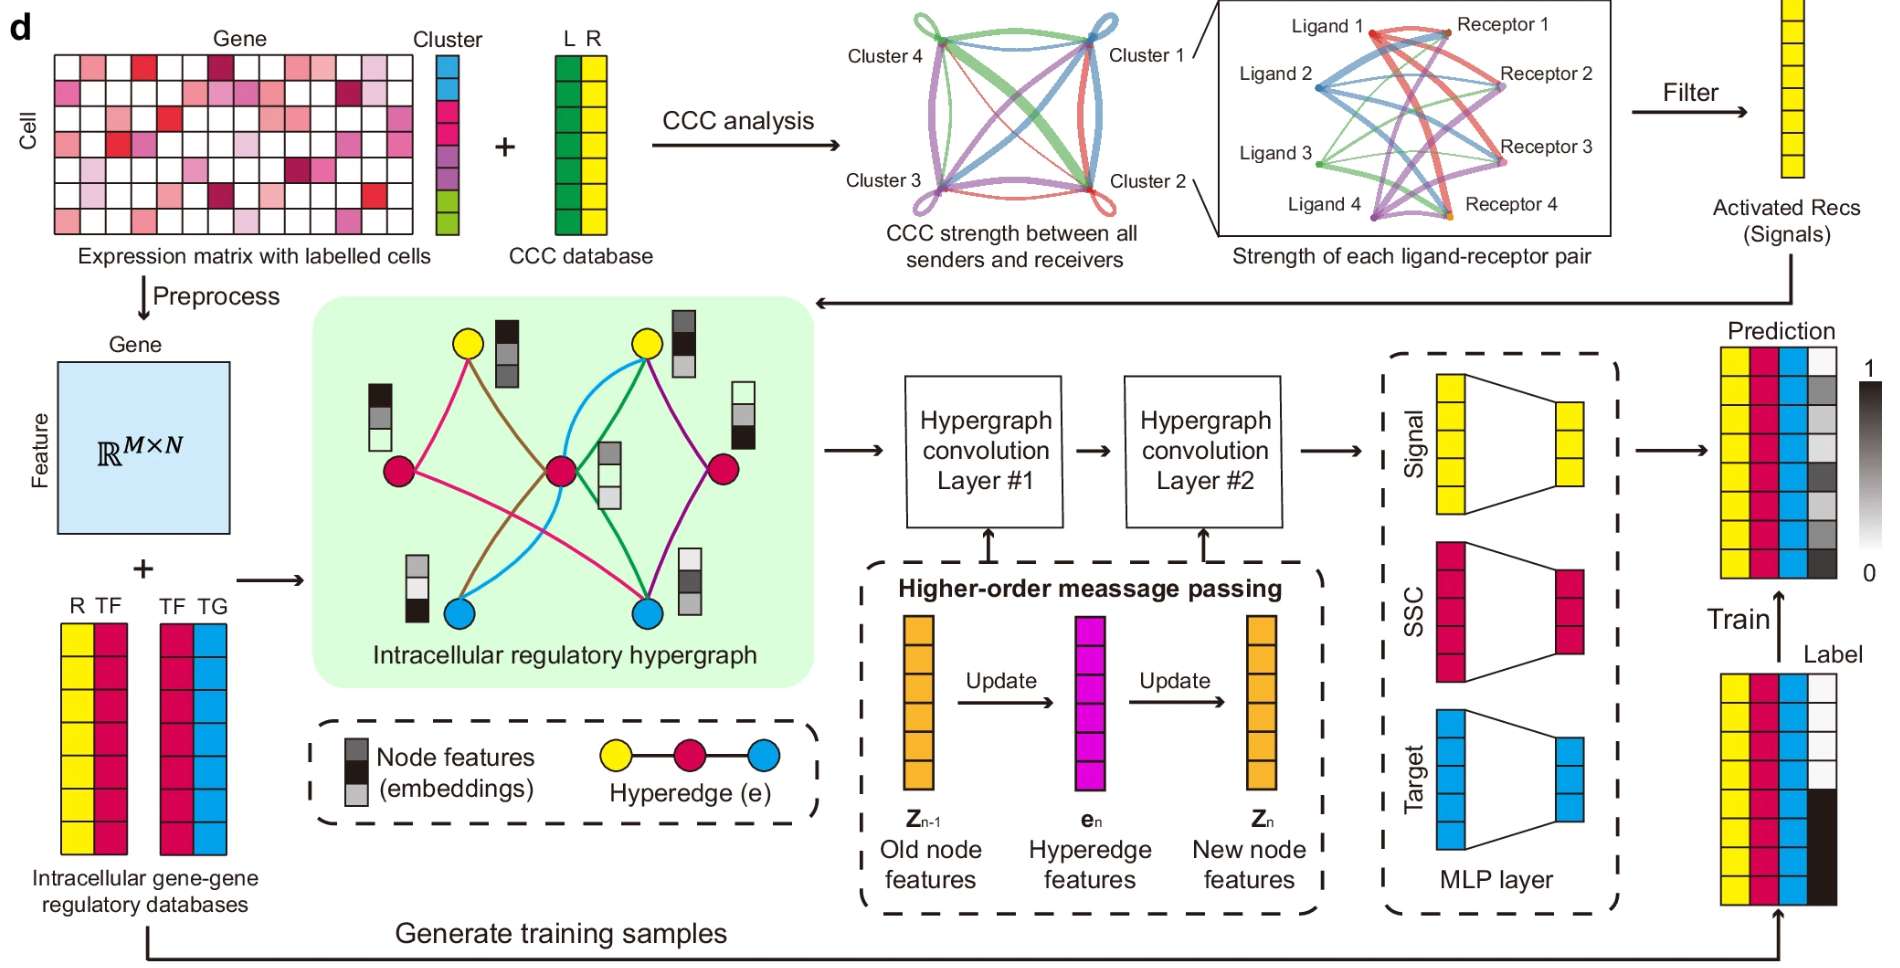
SigXTalk引入了"超图(Hypergraph)"的概念。在超图里,一条"超边"可以同时连接多个节点,天然适合表示这种一对多的复杂关系。研究团队构建了一个先验的超图骨架(受体 → 转录因子 → 多个靶基因),然后把单细胞数据输入到一个超图神经网络(HGNN)里去计算,最终输出每条通路被激活的概率。
第三步:量化调控强度
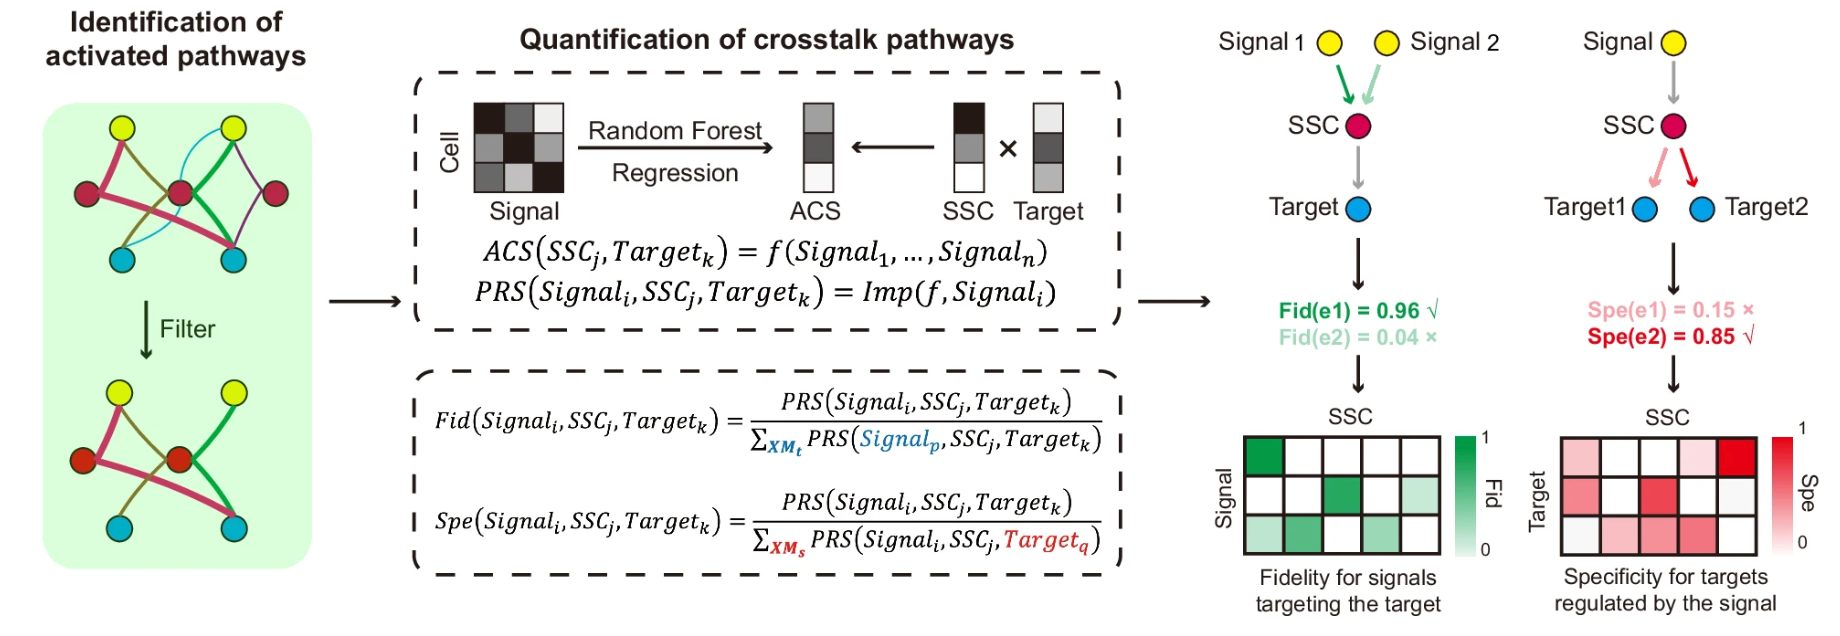
过滤掉那些低概率的通路后,SigXTalk会利用随机森林算法来量化每条通路的"调控强度"。简单说,就是通过拟合计算,看看上游信号的变化到底对下游靶基因的表达贡献了多少比例。
第四步:识别和拆解串扰模块
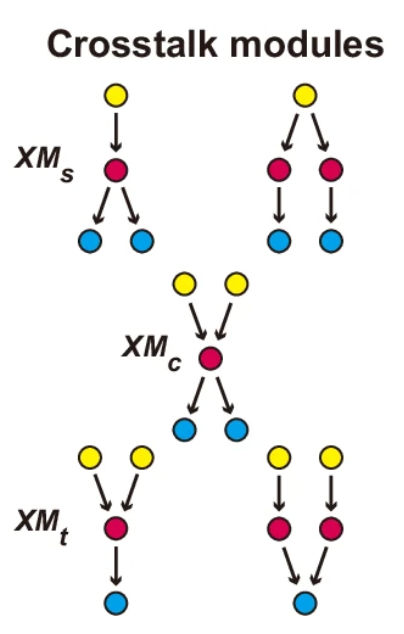
最后,系统会把那些共享了信号源、共享了中间调控组件、或者共享了靶基因的通路归并到同一个"串扰模块"里。在每个模块内部,就可以精确计算出每条通路的保真度和特异性了。
| 类型 | 共享内容 |
|---|---|
| XMs | 上游CCC信号 |
| XMC | 中间调控组件(TF等) |
| XMT | 下游靶基因 |
实战操作
如果以上的理论部分看起来很吓人,不用着急,跟着我一起实际操作一遍就能更好的理解了。